近日,土壤生态实验室在 Functional Ecology上发表题为 “Monospecific cover crops perpetuate soil biotic homogenization in croplands across diverse soils” 的研究论文,报道了不同土壤类型的大尺度采样与温室同质园种植将很可能加剧农田土壤生物群落同质化、且最终的功能后果因覆盖作物类型而异的新发现。研究结果有助于加强对如何应用覆盖作物维持农田土壤生物群落和功能的认识,并为指导农业生态系统管理提供科学依据。
可持续农业被视为逆转生物多样性下降及生物群落同质化的重要途径(Holl et al., 2022; Priyadarshana et al., 2024)。覆盖作物作为一种重要的再生农业或生态集约化农业措施,通过调节土壤碳库、有机质分解和养分循环等过程,在维持多种生态系统功能中发挥关键作用(Huang et al., 2025; Nouri et al., 2022; Qiu et al., 2024)。然而,尽管覆盖作物能够促进土壤健康(Xue et al., 2026),但若覆盖作物单一种植在全球范围内广泛种植,是否也会引发土壤生物多样性丧失的风险呢?目前,关于覆盖作物单一种植如何影响土壤生物同质化仍知之甚少。
覆盖作物单一种植对农田土壤生物同质化贡献的不确定性主要源于三个方面。首先,尽管已有若干荟萃分析评估了覆盖作物对农业土壤群落的影响,但荟萃分析本身存在噪声,且至今缺乏大规模实验研究来探讨覆盖作物对土壤生物同质化的贡献(Kim et al., 2020; Muhammad et al., 2021)。其次,目前关于覆盖作物影响土壤生物群落同质化的结论主要基于局域尺度,且多基于局域α多样性(即丰富度)(Ghosh et al., 2025; Zhou et al., 2024),而对大尺度上影响土壤生物β多样性(即跨地点微生物相异性)的认识仍十分有限。第三,已有大量研究表明覆盖作物可以提升局域生物多样性(α多样性)和多种生态系统功能(α多功能性)(Garland et al., 2021; Zeng et al., 2023; Zhao et al., 2022)。然而,覆盖作物如何影响β多功能性(即跨地点多功能相异性)仍不清楚。生物同质化可以通过β多样性的降低来量化,即地点间群落相似性的增加(Banerjee et al., 2024)。泛化种和特化种可能对环境过滤的响应不同,因为特化种具有更窄的空间分布,而泛化种则出现在更广泛的环境条件下(Karp et al., 2012; McKinney & Lockwood, 1999)。因此,覆盖作物种植可能差异性地改变这些生态类群的β多样性,并对多功能性同质化产生不同后果。然而,覆盖作物单一种植对土壤生物同质化的影响是否会级联到多种生态系统功能,仍不清楚。
基于此,本研究通过采集中国不同区域的27份玉米田土壤样品,进行为期五个月的温室同质园实验(图1),设置三种处理:豆科覆盖作物(毛叶苕子,Vicia villosa Roth)、禾本科覆盖作物(多花黑麦草,Lolium multiflorum Lam.)和不种植覆盖作物,共243个盆钵或微宇宙(27样点 × 3处理 × 3重复)。以此探究:覆盖作物单一种植如何影响土壤生物同质化?对土壤生物同质化的影响如何级联到生态系统功能?
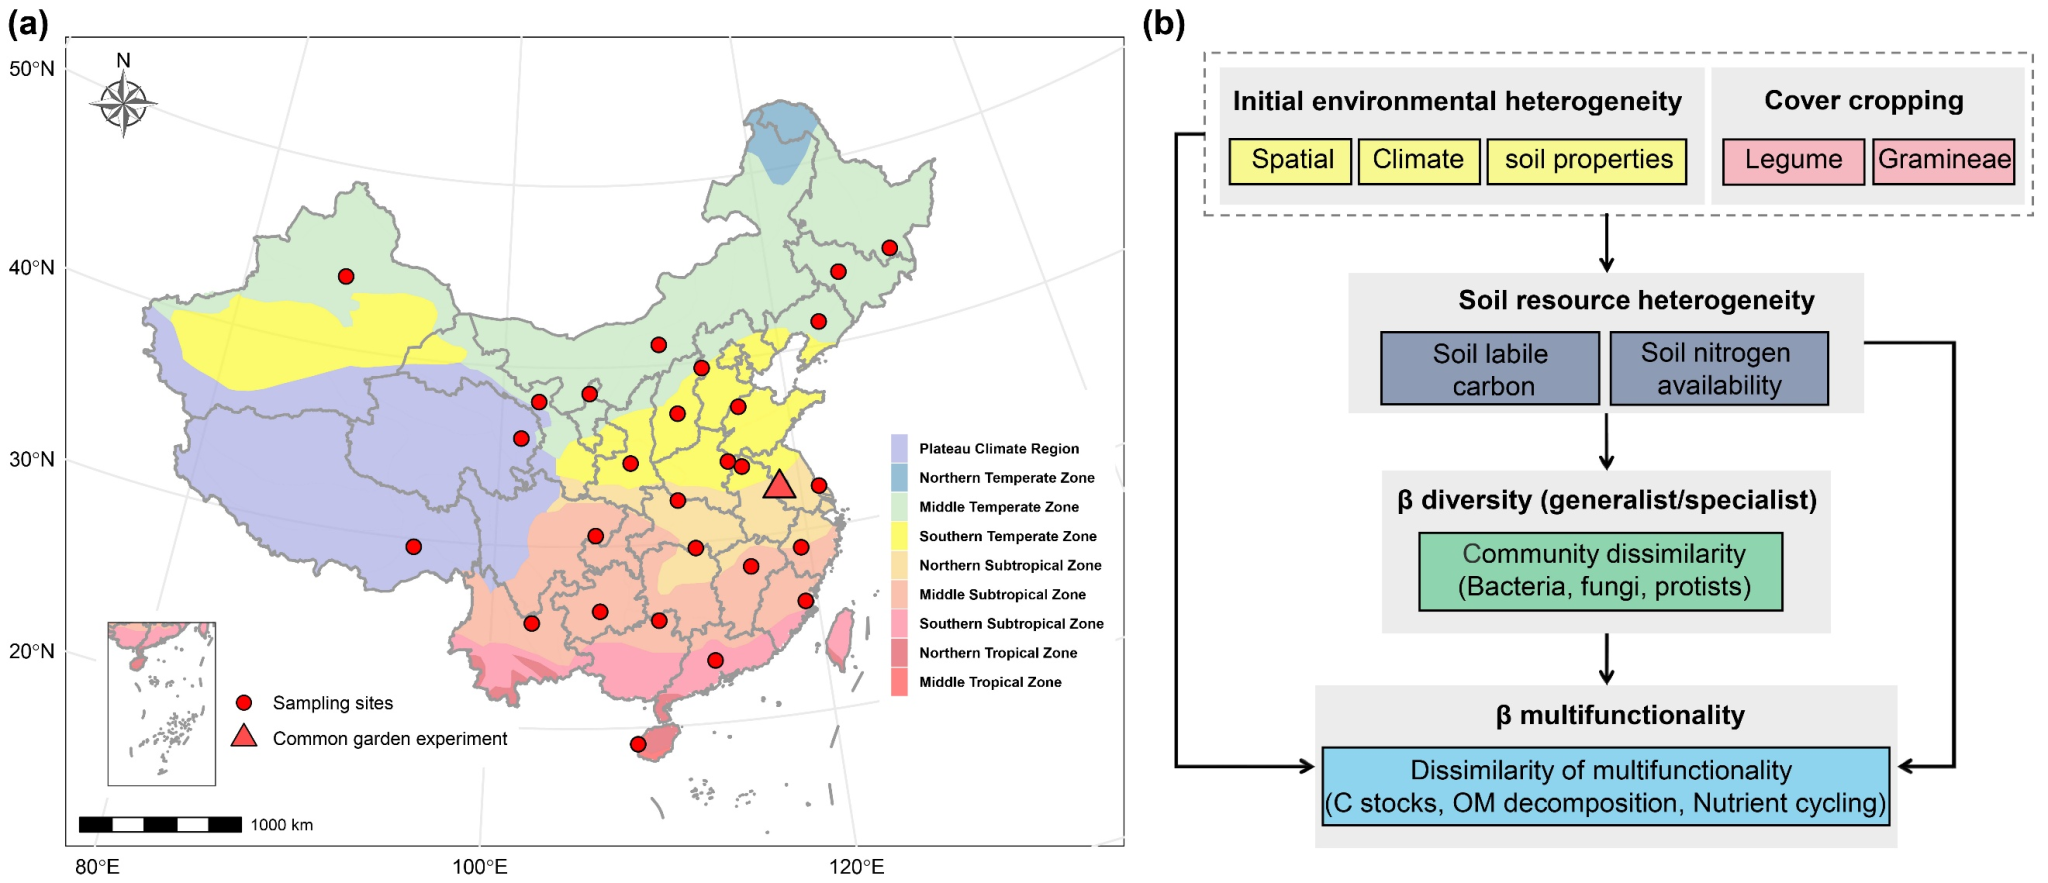
图1. 实验设计与概念框架。(a) 在大尺度上调查了中国27个玉米种植样点,涵盖广泛的气候和土壤梯度。此外,利用从27个调查样点采集的土壤进行了为期五个月的同质园实验,设置豆科(毛叶苕子,Vicia villosa Roth)、禾本科(多花黑麦草,Lolium multiflorum Lam.)和不种植覆盖作物三种处理。(b) 概念框架展示了初始环境异质性、覆盖作物种植、土壤资源异质性、生物β多样性和β多功能性之间的关系。初始环境异质性包括空间、气候和初始土壤性质异质性。土壤资源异质性包括土壤活性碳和氮素有效性异质性,而生物β多样性代表细菌、真菌和原生生物群落的相异性,包括其泛化种和特化种类群。β多功能性代表多种生态系统功能的总体相异性,包括碳库、有机质分解和养分循环。箭头表示这些组分之间假设并检验的关系。土壤资源异质性、β多样性和β多功能性的较低值分别表示更大的土壤资源同质化、生物同质化和多功能性同质化。
结果表明,单一种植豆科和禾本科覆盖作物均显著促进了土壤细菌、真菌和原生生物的生物群落同质化(即更低的β多样性)。此外,种植禾本科覆盖作物还促进了土壤多功能性同质化(即更低的β多功能性),这与土壤生物群落同质化的增加有关(图2;图3)。相反,种植豆科覆盖作物降低了土壤细菌泛化种的同质化,从而缓解了多功能性同质化。重要的是,初始土壤性质的异质性抵消了单一物种覆盖作物对土壤群落和多功能性的同质化效应,凸显了其在维持生态异质性中的关键作用(图4;图5)。从初步的结果看,这项工作强调了覆盖作物单一种植可导致不同土壤间的生物同质化,对农业生态系统中土壤生物多样性和生态系统功能的管理具有深远意义。
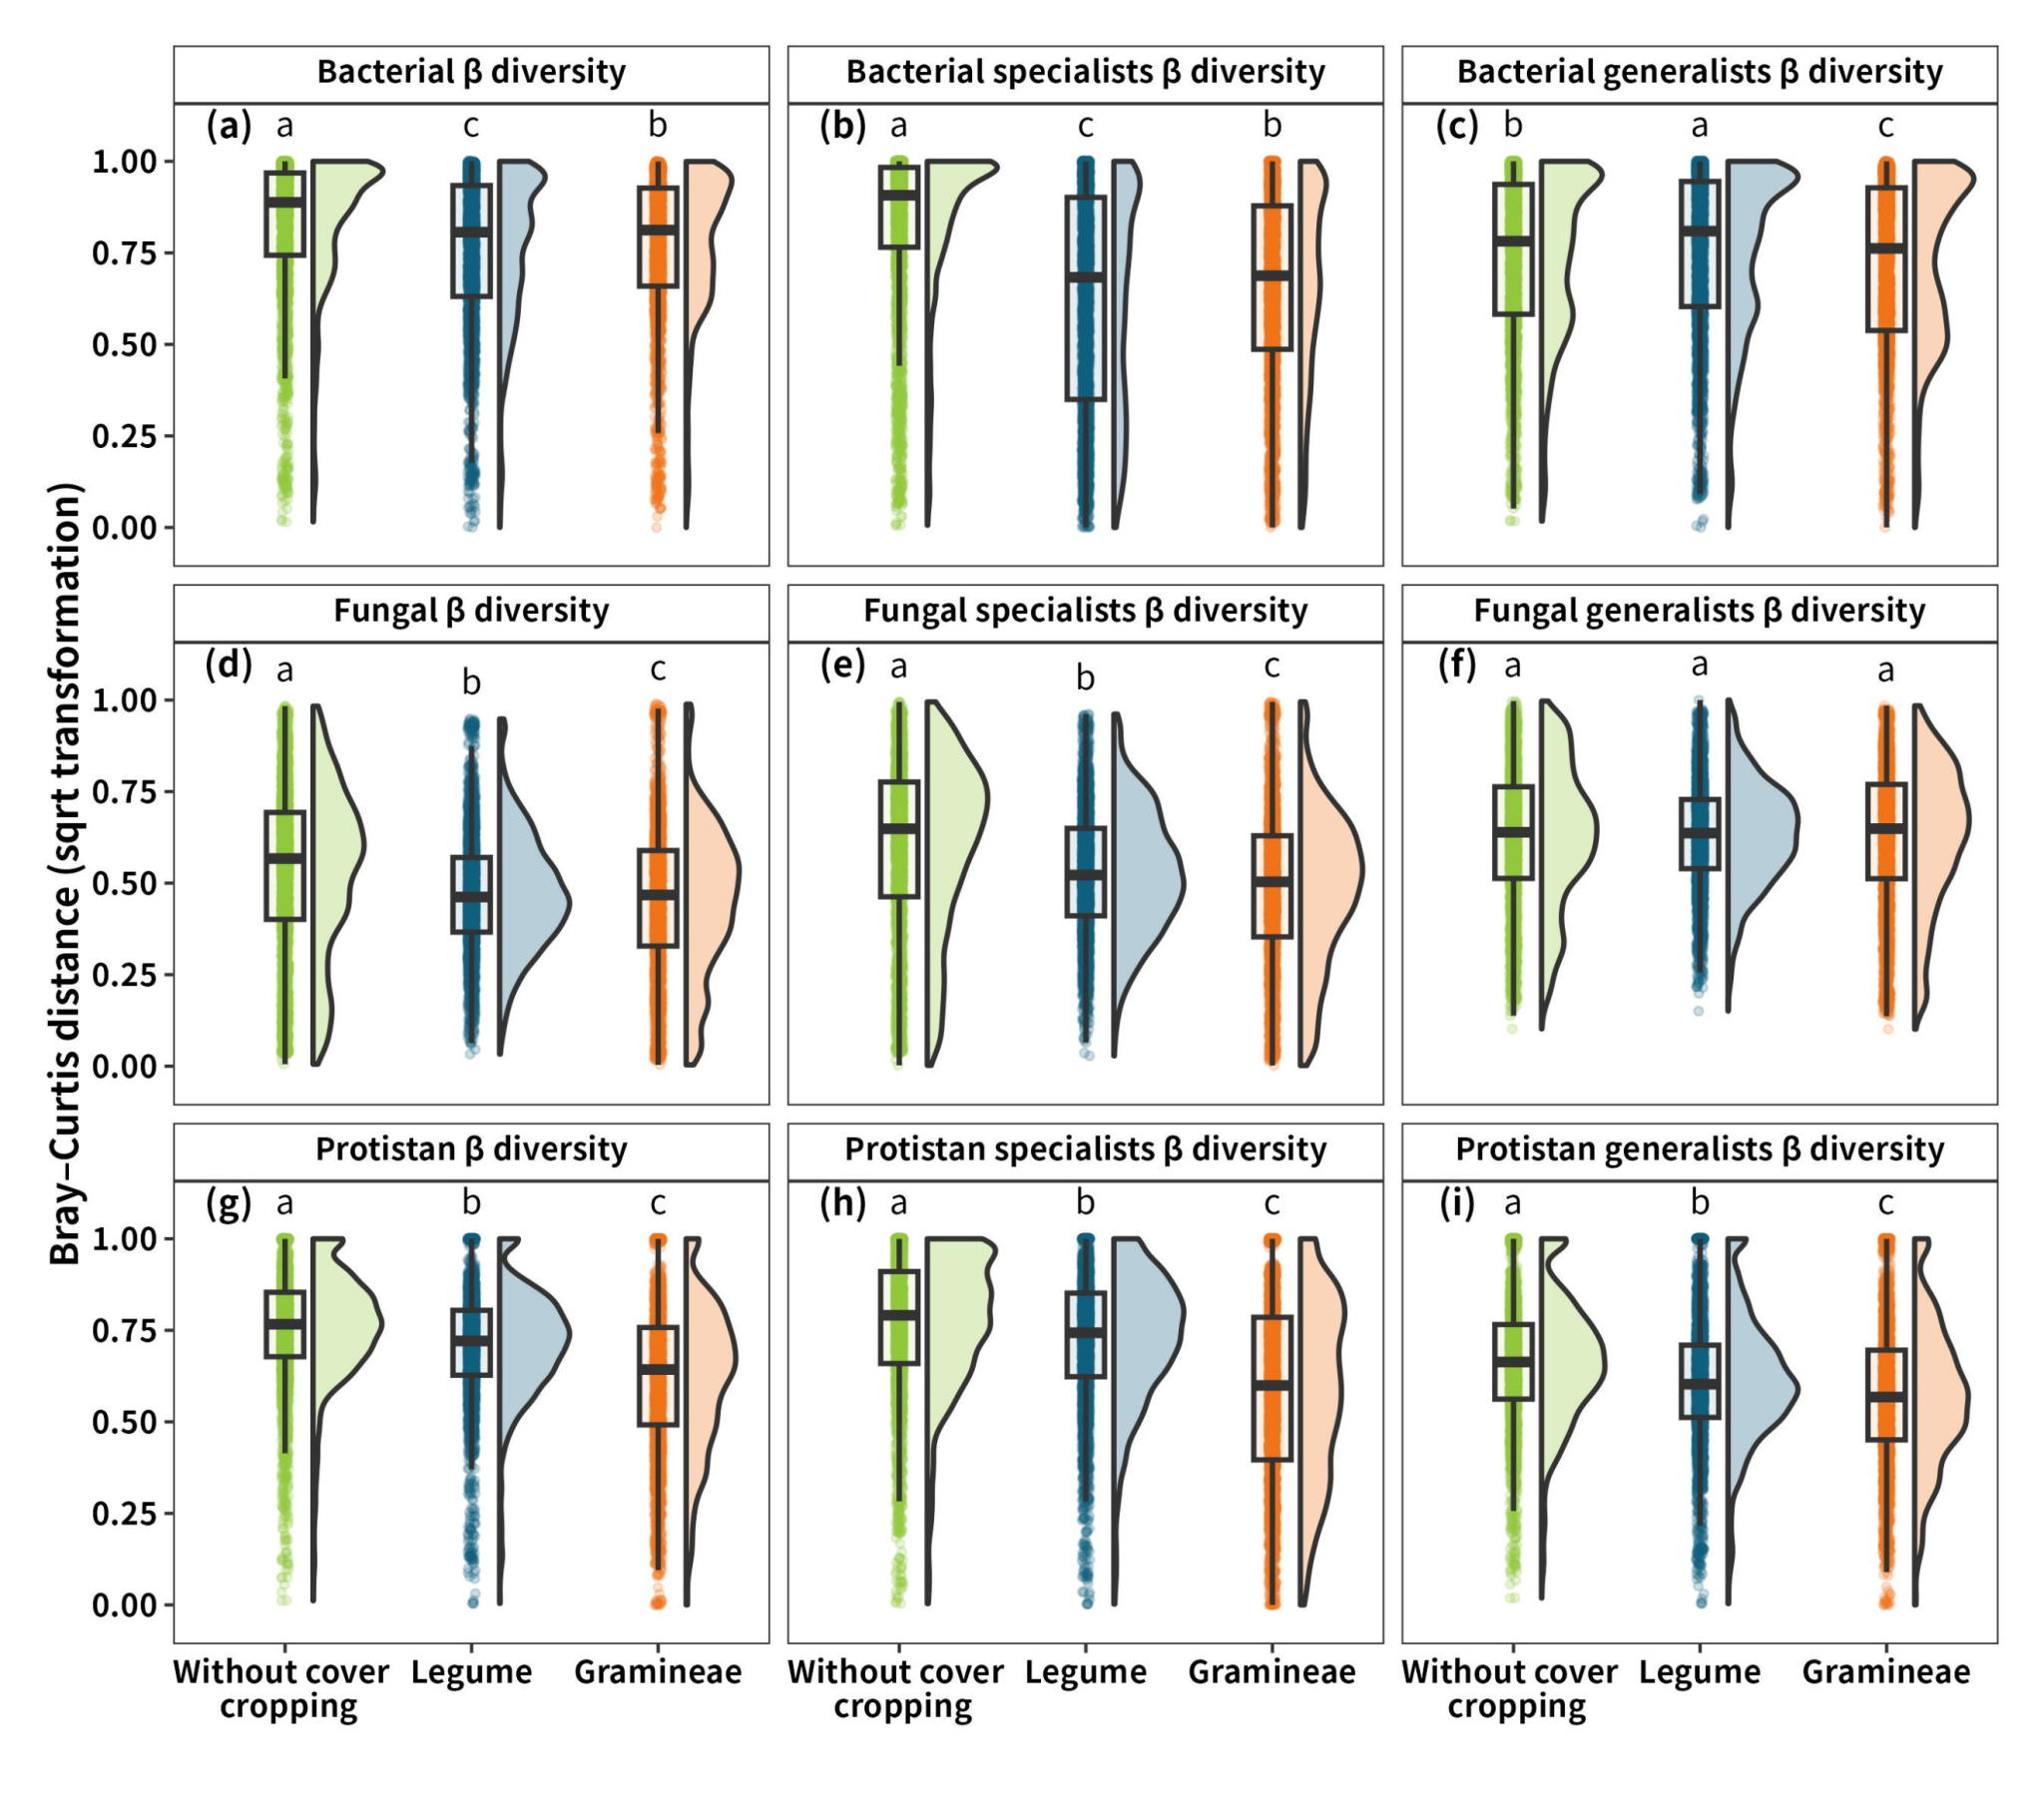
图2. 豆科和禾本科覆盖作物种植对土壤生物β多样性的影响。(a) 细菌β多样性,(b) 细菌特化种β多样性,(c) 细菌泛化种β多样性,(d) 真菌β多样性,(e) 真菌特化种β多样性,(f) 真菌泛化种β多样性,(g) 原生生物β多样性,(h) 原生生物特化种β多样性,(i) 原生生物泛化种β多样性。较低的β多样性表示更大的生物同质化。每个β多样性分布基于每个覆盖作物处理内81个样品之间的3240个成对比较。不同小写字母表示处理间存在显著差异(P < 0.05)。
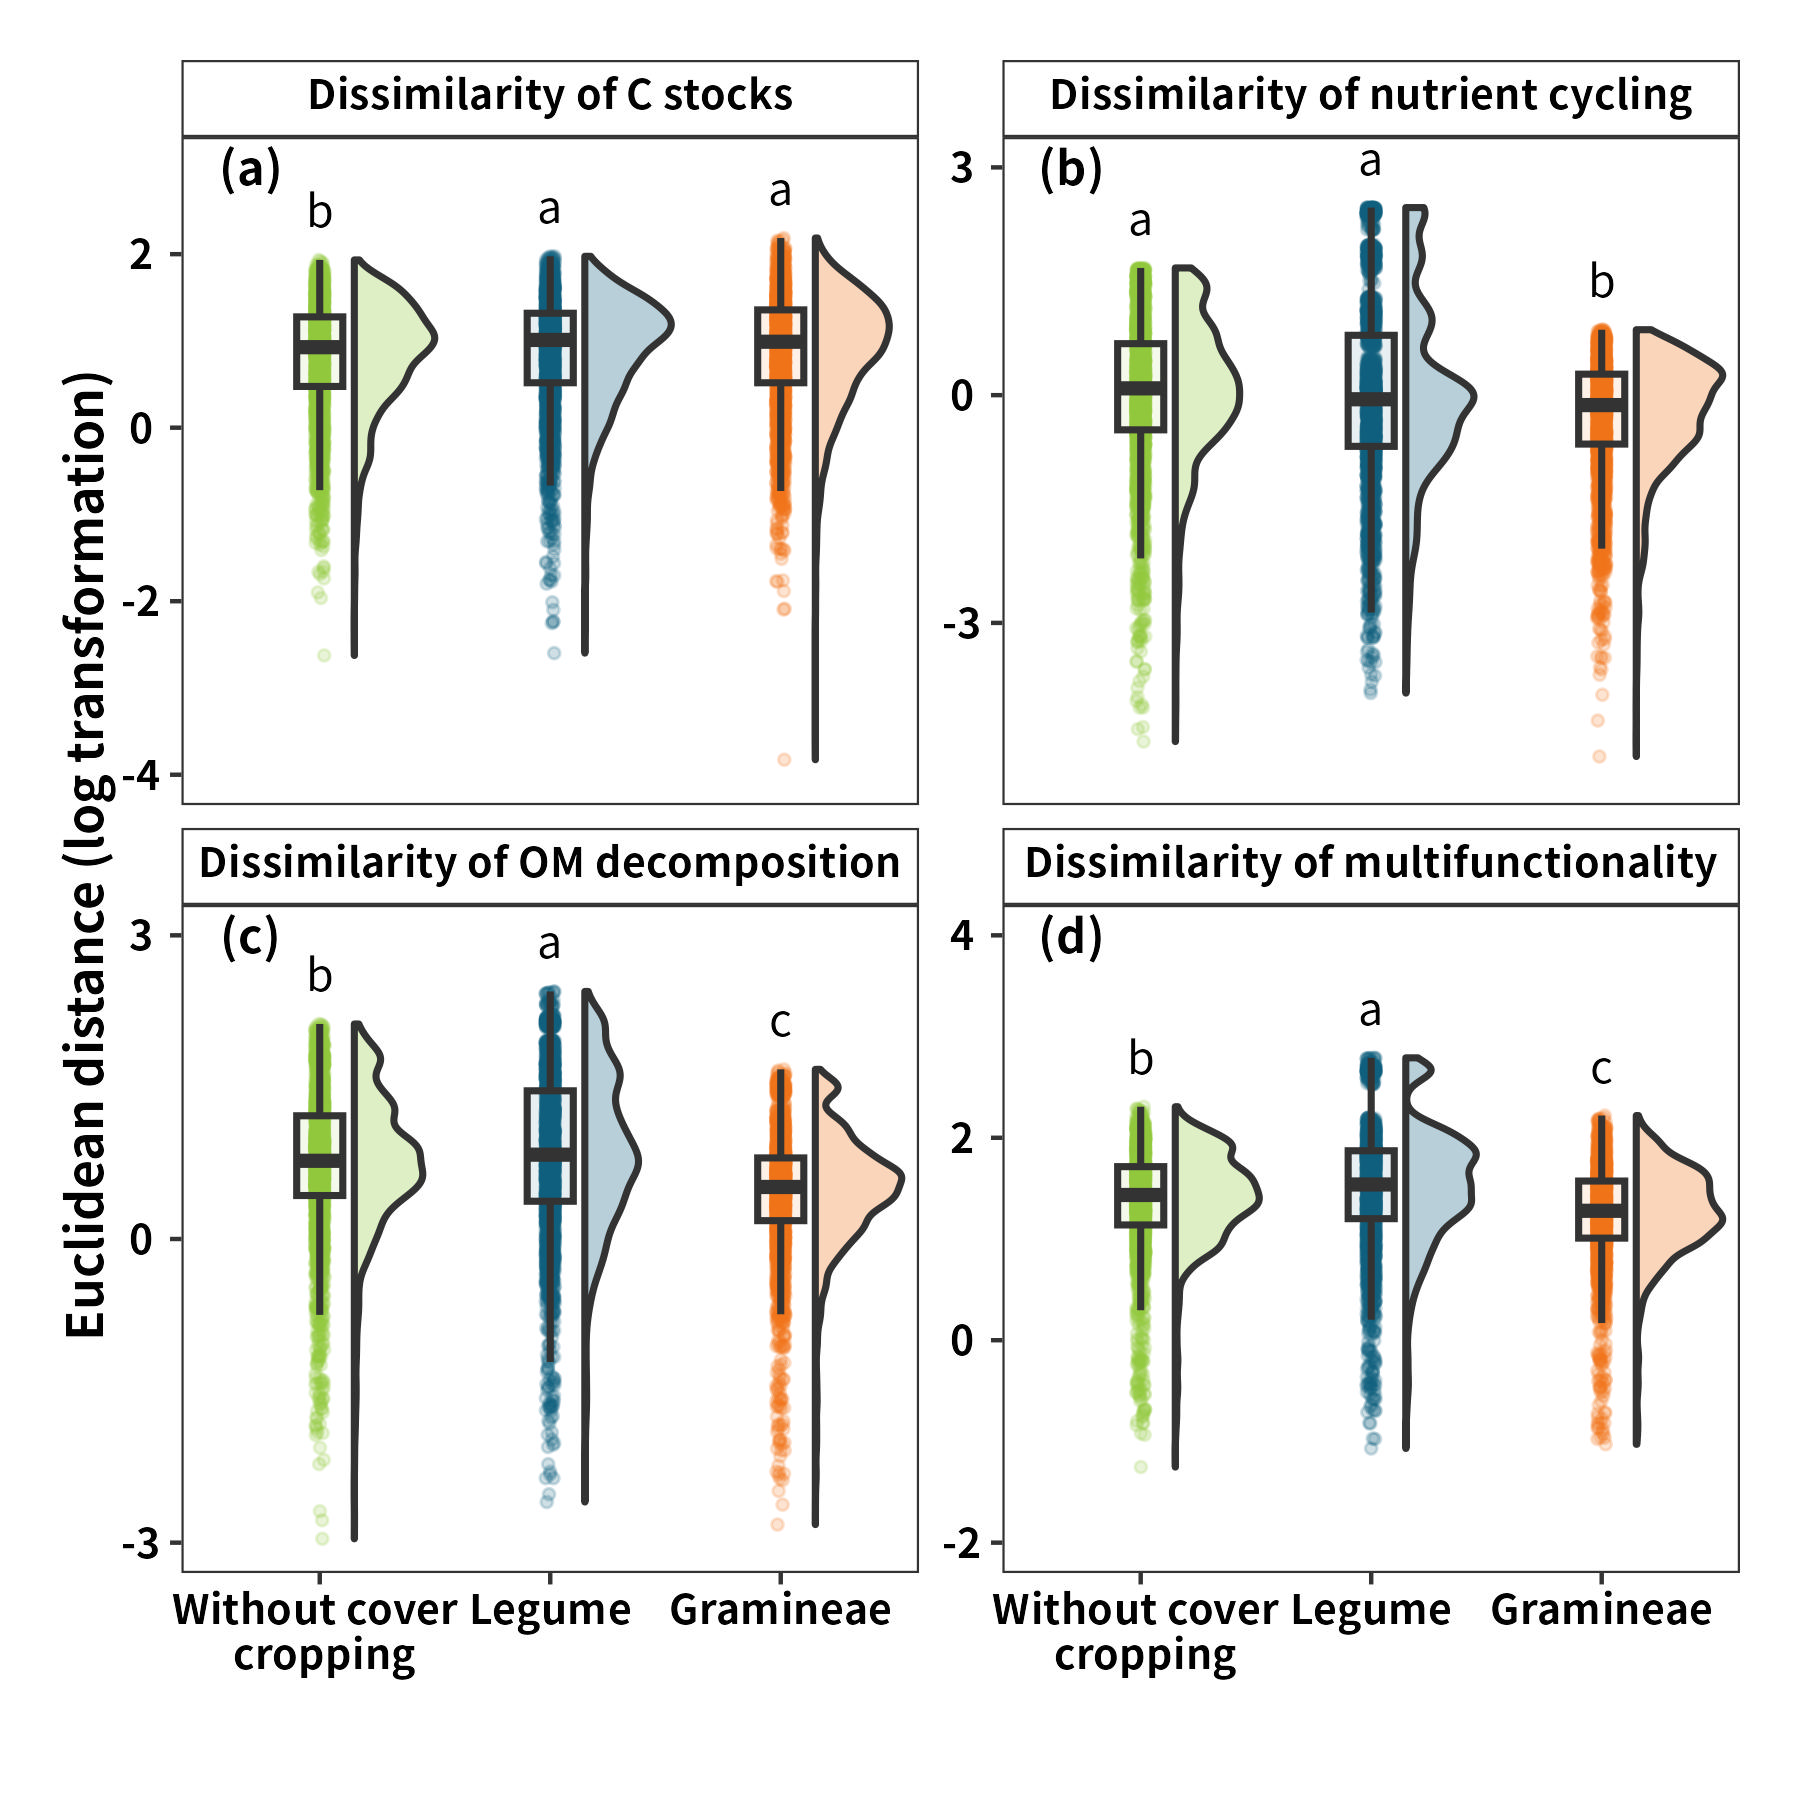
图3. 豆科和禾本科覆盖作物种植对土壤β多功能性的影响。(a) 碳库相异性,(b) 养分循环相异性,(c) 有机质分解相异性,(d) β多功能性。较低的β多功能性表示更大的多功能性同质化。不同小写字母表示处理间存在显著差异(P < 0.05)。
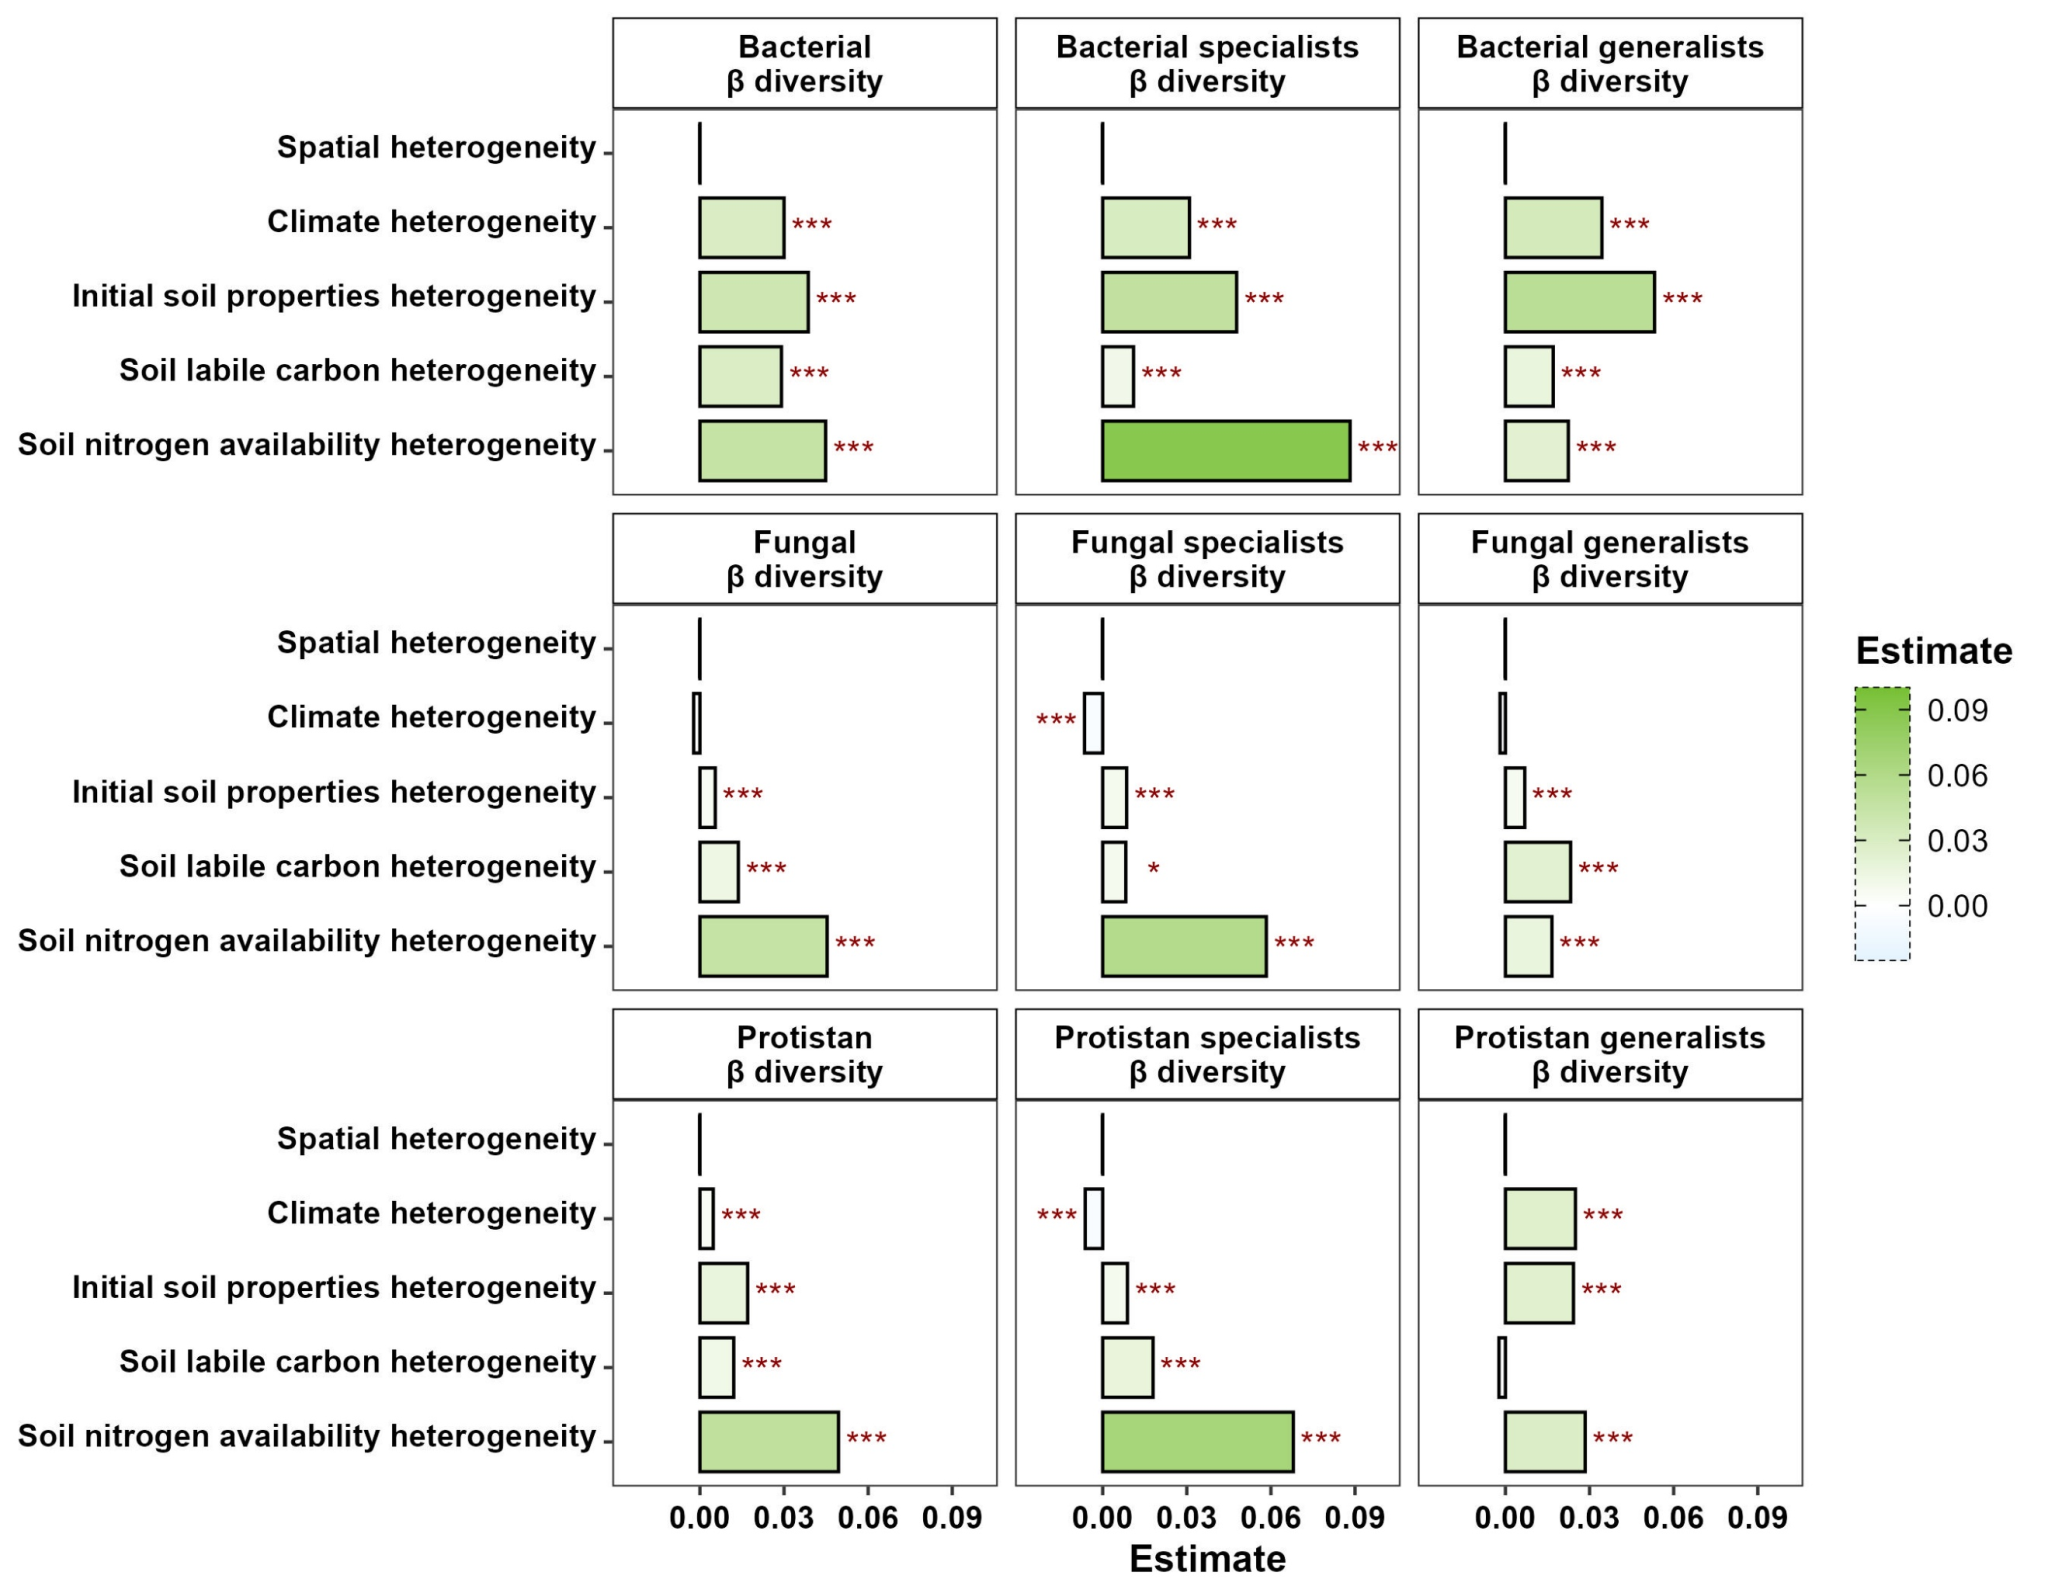
图4. 非生物因子对土壤生物β多样性的影响。较低的β多样性表示更大的生物同质化。柱值和颜色表示带置换检验的多元线性回归估计值。显著性表示为 P < 0.001(***),P < 0.01(**),P < 0.05(*)。
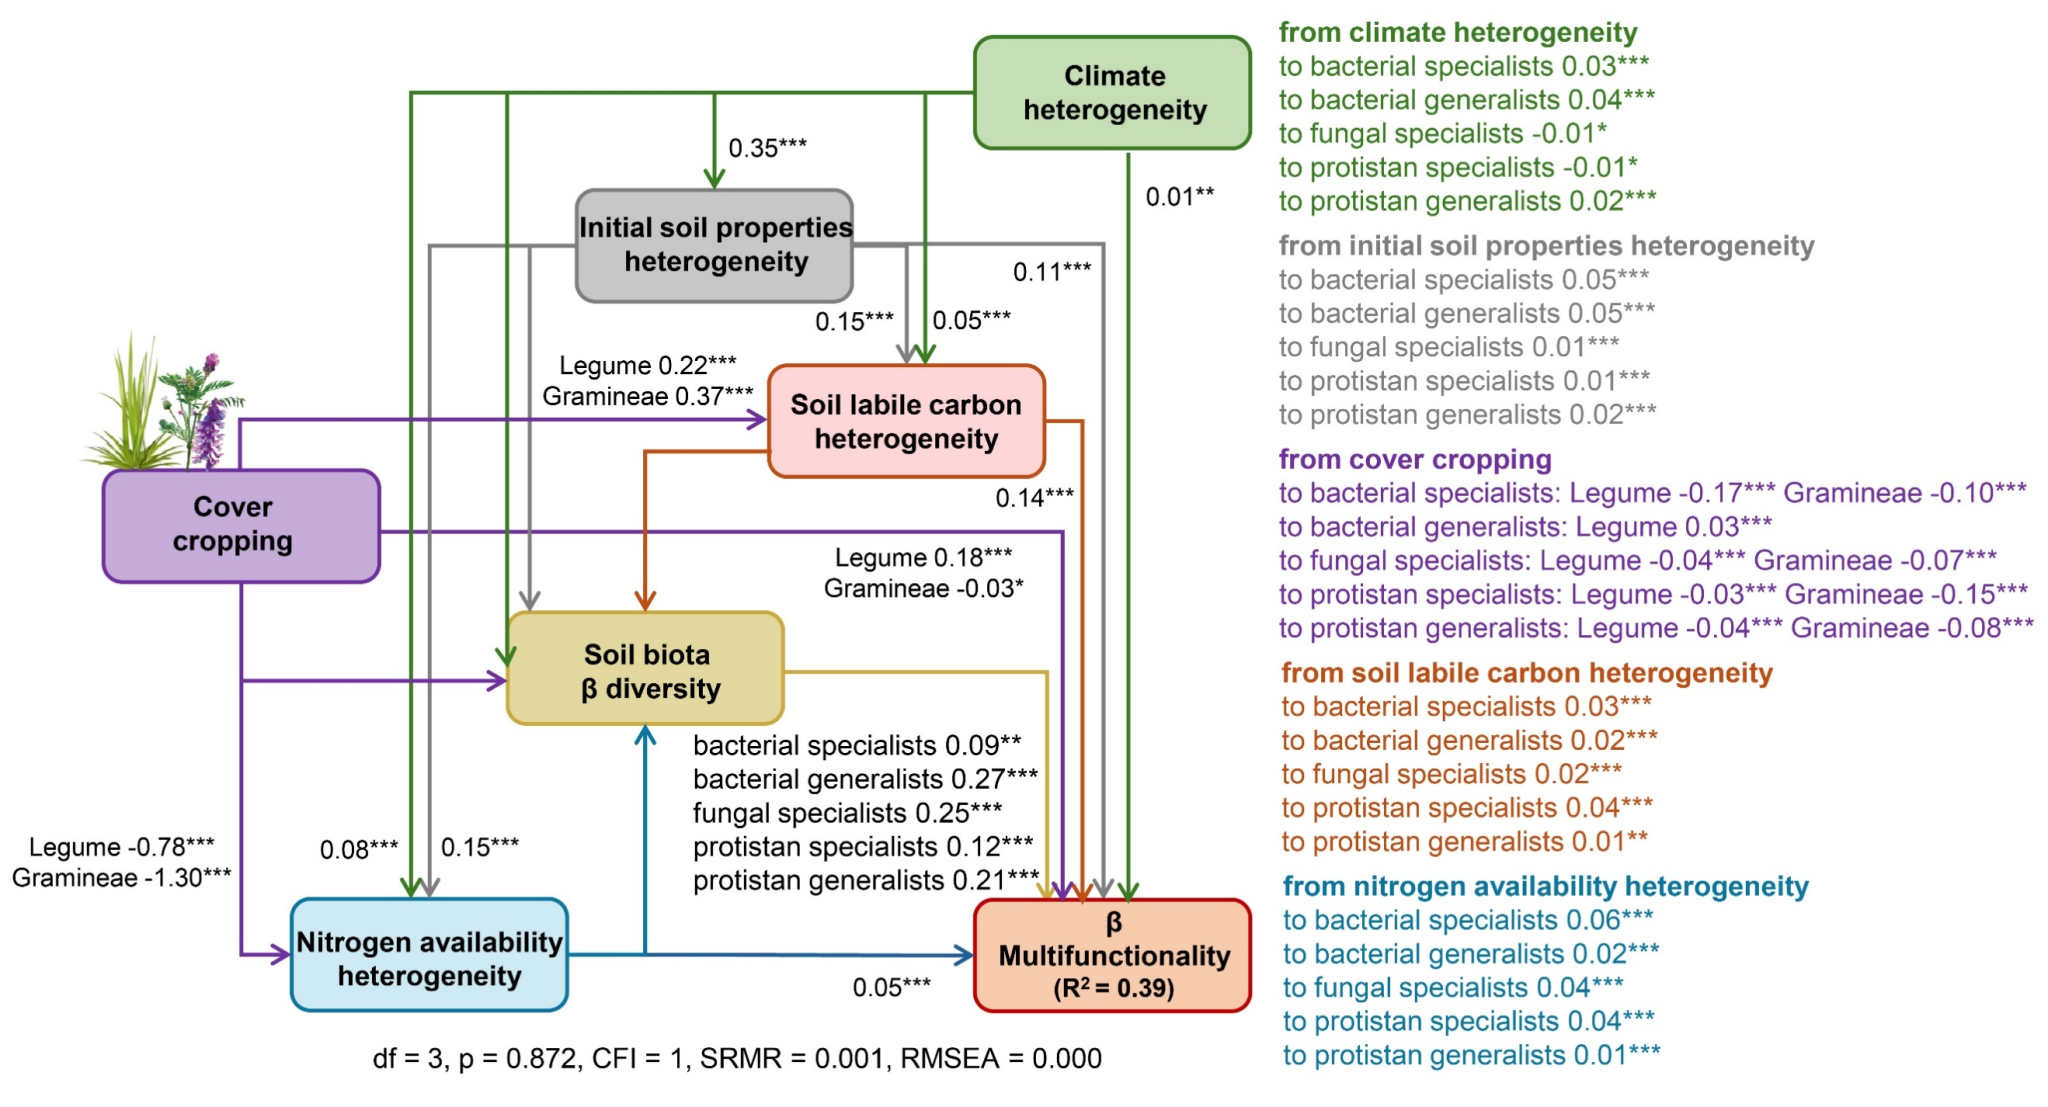
图5. 影响土壤β多功能性的潜在主要因素。结构方程模型展示了气候异质性、初始土壤性质异质性、覆盖作物类型、土壤活性碳异质性、氮素有效性异质性、生物β多样性(细菌特化种、细菌泛化种、真菌特化种、原生生物特化种、原生生物泛化种)对β多功能性的直接和间接影响。较低的β多功能性表示更大的多功能性同质化。实线箭头表示统计显著的路径,数字表示标准化路径系数。星号表示基于自助法标准误的双侧Wald检验显著性水平:P < 0.001(***),P < 0.01(**),P < 0.05(*)。
土壤生态实验室石思博博士(目前任职于武汉理工大学)为第一作者,刘满强教授为通讯作者。中国科学院南京土壤研究所杨腾副研究员、中国科学院厦门城市环境研究所龚鑫博士、西班牙塞维利亚自然资源和农业生物研究所Manuel Delgado-Baquerizo教授和武汉理工大学方临川教授及本实验室李先平副教授、程赛赛博士,陈小云教授共同参与并指导了该项工作。本工作得到国家重点研发计划(2022YFD1500203)、国家自然科学基金(42077047)和甘肃省科技计划(24RCKB002)的支持。
参考文献:
Banerjee S, Zhao C, Garland G, Edlinger A, García-Palacios P, Romdhane S, Degrune F, Pescador DS, Herzog C, Camuy-Velez LA, Bascompte J, Hallin S, Philippot L, Maestre FT, Rillig MC, Van Der Heijden MGA, 2024. Biotic homogenization, lower soil fungal diversity and fewer rare taxa in arable soils across Europe. Nature Communications, 15(1): 327.
Chaplot V, Smith P, 2023. Cover crops do not increase soil organic carbon stocks as much as has been claimed: What is the way forward? Global Change Biology, 29(22): 6163-6169.
Fan K, Delgado-Baquerizo M, Guo X, Wang D, Zhu Y, Chu H, 2021. Biodiversity of key-stone phylotypes determines crop production in a 4-decade fertilization experiment. The ISME Journal, 15(2): 550-561.
French E, Kaplan I, Iyer-Pascuzzi A, Nakatsu CH, Enders L, 2021. Emerging strategies for precision microbiome management in diverse agroecosystems. Nature Plants, 7(3): 256-267.
Garland G, Edlinger A, Banerjee S, Degrune F, García-Palacios P, Pescador DS, Herzog C, Romdhane S, Saghai A, Spor A, Wagg C, Hallin S, Maestre FT, Philippot L, Rillig MC, Van Der Heijden MGA, 2021. Crop cover is more important than rotational diversity for soil multifunctionality and cereal yields in European cropping systems. Nature Food, 2(1): 28-37.
Ghosh D, Shi Y, Zimmermann IM, Holzhauser K, Von Bergen M, Kaster A, Spielvogel S, Dippold MA, Müller JA, Jehmlich N, 2025. Cover crop root channels promote bacterial adaptation to drought in the maize rhizosphere. Global Change Biology, 31(9): e70512.
Holl KD, Luong JC, Brancalion PHS, 2022. Overcoming biotic homogenization in ecological restoration. Trends in Ecology & Evolution, 37(9): 777-788.
Huang W, Jiang L, Zhou J, Kim H, Xiao J, Luo Y, 2025. Reduced erosion augments soil carbon storage under cover crops. Global Change Biology, 31(3): e70133.
Jansson JK, McClure R, Egbert RG, 2023. Soil microbiome engineering for sustainability in a changing environment. Nature Biotechnology, 41(12): 1716-1728.
Jing J, Cong WF, Bezemer TM, 2022. Legacies at work: plant–soil–microbiome interactions underpinning agricultural sustainability. Trends in Plant Science, 27(8): 781-792.
Karp DS, Rominger AJ, Zook J, Ranganathan J, Ehrlich PR, Daily GC, 2012. Intensive agriculture erodes β-diversity at large scales. Ecology Letters, 15(9): 963-970.
Kim N, Zabaloy MC, Guan K, Villamil MB, 2020. Do cover crops benefit soil microbiome? A meta-analysis of current research. Soil Biology and Biochemistry, 142: 107701.
McKinney ML, Lockwood JL, 1999. Biotic homogenization: A few winners replacing many losers in the next mass extinction. Trends in Ecology & Evolution, 14(11): 450-453.
Muhammad I, Wang J, Sainju UM, Zhang S, Zhao F, Khan A, 2021. Cover cropping enhances soil microbial biomass and affects microbial community structure: A meta-analysis. Geoderma, 381: 114696.
Nouri A, Lukas S, Singh S, Singh S, Machado S, 2022. When do cover crops reduce nitrate leaching? A global meta-analysis. Global Change Biology, 28(15): 4736-4749.
Priyadarshana TS, Martin EA, Sirami C, Woodcock BA, Goodale E, Martínez-Núñez C, Lee M, Pagani-Núñez E, Raderschall CA, Brotons L, Rege A, Ouin A, Tscharntke T, Slade EM, 2024. Crop and landscape heterogeneity increase biodiversity in agricultural landscapes: A global review and meta-analysis. Ecology Letters, 27(3): e14412.
Qiu T, Shi Y, Peñuelas J, Liu J, Cui Q, Sardans J, Zhou F, Xia L, Yan W, Zhao S, Peng S, Jian J, He Q, Zhang W, Huang M, Tan W, Fang L, 2024. Optimizing cover crop practices as a sustainable solution for global agroecosystem services. Nature Communications, 15(1): 10617.
Toju H, Peay KG, Yamamichi M, Narisawa K, Hiruma K, Naito K, Fukuda S, Ushio M, Nakaoka S, Onoda Y, Yoshida K, Schlaeppi K, Bai Y, Sugiura R, Ichihashi Y, Minamisawa K, Kiers ET, 2018. Core microbiomes for sustainable agroecosystems. Nature Plants, 4(5): 247-257.
Xue W, Liu T, Cheng S, Chen X, Whalen JK, Liu M, 2026. Soil biota abundance supports ecosystem multifunctionality under carbon farming. National Science Review, 13(10): nwag247.
Zeng Q, Yin M, Fu LB, Singh BK, Liu SY, Chen H, Ge AH, Han LL, Zhang LM, 2023. Green manure substitution for potassium fertilizer promotes agro-ecosystem multifunctionality via triggering interactions among soil, plant and rhizosphere microbiome. Plant and Soil, 498: 431-450.
Zhao Z, Ma Y, Feng T, Kong X, Wang Z, Zheng W, Zhai B, 2022. Assembly processes of abundant and rare microbial communities in orchard soil under a cover crop at different periods. Geoderma, 406: 115543.
Zhou G, Fan K, Gao S, Chang D, Li G, Liang T, Liang H, Li S, Zhang J, Che Z, Cao W, 2024. Green manuring relocates microbiomes in driving the soil functionality of nitrogen cycling to obtain preferable grain yields in thirty years. Science China Life Sciences, 67(3): 596-610.
原文链接:https://doi.org/10.1111/1365-2435.70483
编辑:石思博
校正:朱梦一,刘满强
审核:刘满强
